Епигенетиката на д-р Цанев в светлината на съвременната наука от д-р Константин Чипев
Епигенетика на д-р Цанев в светлината на съвременната наука
Няма да се спирам на първоначалните постижения на д-р Цанев и колегите му в областта на елекрофорезата (фиг.1) като метод за изследване на РНК, макар че те издигат в 60-те години на миналия век името на България на световно ниво (1). 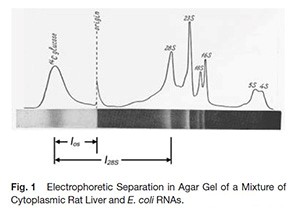
Неговото внимание още тогава се обръща към по-широкия фронт на изследване на регулацията на гените в еукариотните клетки. По това време вече е известен модела на Жакоб и Моно – алостеричен механизъм на активирaне и рeпресия на бактериалните оперони. При еукариотите, както сe знае, нещата са по-сложни и има гени които са инактивирани, други са предразположени към активност, а трети са вече активни. Това схематично е представено в модела на д-р Цанев (Figure 2 oт (2), 1971) чрез блокирани/деблокирани участъци от генома, наред с репресирани и транскрибирани области.
Заедно с математика Сендов те записват това в двоичен код и построяват математичен модел на клетъчна регулация, изразен в система диференциални уравнения. Моделът предполага съществуването на епигенетични фактори: белтъци–блокатори (напр. хистоните) и деблокатори (тогава още неидентифицирани агенти – напр. нехистонови белтъци и др.) – фиг. 2. Години наред след това подобни модели – на клетъчни автомати, бяха теоретично изследвани под името “мрежи на Цанев-Сендов”. Тук е мястото да споменем, че по това време (1969) Бритън и Дейвидсън предлагат друг модел – на РНК-мрежи, при който регулацията в еукариотните клетки става, вместо с хистонови или нехистонови белтъци, чрез взаимодействие на некодиращи РНК и с промоторните участъци на гените. днес, с откриване на регулаторното действие на малките, а и в някои случаи и не-толкова малки, РНКи и на модела на Бритън и Дейвидсън бе вдъхнат нов живот. А моделът на Цанев пребъдна, макар че не му се отдаде дължимото в литературата.
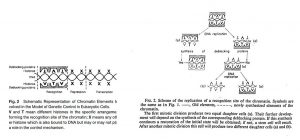
Фиг.2 Блок-схема на репликацията на хроматина в „преднуклеозомната“ ера с деблокиращи белтъци променящи хроматиновото състояние в дъщерните клетки (според (2)).
Основен въпрос бе каква е ролята/функцията на хистоните в състава на хроматина – архитектурна, или освен това и регулаторна. По времето, когато и аз започнах работа в Института по биохимия (през 1977 преименован на ИМБ), изследванията на групата на д-р Цанев бяха изцяло насочени към структурата и функцията на хроматина. Естествено бе да се търси роля на хистоните в диференциацията на клетките. Ако те (хистоните Н2А, Н2В, Н3 и Н4) кодират допълнително информация за това, кои области от генома да се експресират или не, то те трябва да носят някакво разнообразие повече от това да са 4-те компонента на нуклеозомите. Затова някои от нас изследваха хистоновите варианти. Но това не бе достатъчно. Трябваше да се изясни механизма, по който този над-генетичен (епигенетичен) код може да се предаде на следващото поколение след ДНК репликация при митотичните деления на клетките. При удвояването на ДНК клетката има нужда от равен брой нови хистони за да се поддържа нуклеозомната плътност по дължината на хроматина. Ако старите хистони остават по ДНК как се разполагат спрямо разклоняващата се вилица ДНК – еднопосочно или двупосочно, случайно ли минават “вляво/вдясно”, като цели нови октамери или като смес от стари и нови хистони (последното предполага разцепване на хистоновия октамер)? И ако с циклохексимид се спре белтъчната синтеза, колко и къде ще са свободните от нуклеозоми участъци на ДНК. Л. Василев участвуваше под ръководството на Г. Русев и др. Те стигнаха до убеждението, че полуконсервативния модел, при който нуклеозомите се разпределят по двете рамена на вилицата най-добре обяснява резултатите (3). В предишна работа Русев и Цанев доказваха, че разпределението на хистоните при хроматиновата репликация не е случайно и октамерите следва да са съставени от смес на нови със стари хистони (4a). Но във всяка наука нищо не е окончателно и скоро след това Русев и Хенкок, потвърждавайки двустранната сегрегация на нуклеозомите показаха, че старите и новите хистони не се смесват в нуклеозомите (4б). С времето този модел се наложи – хистоновите октамери се разпределят като цяло и без смесване с нови хистони (само стари или само нови хистони в състава на една нуклеозома) и наглед случайно между двете рамена на репликационната вилица. При това положение не ставаше ясно как при клетъчното деление с помощта на хистони ще може да става преноса на епигенетична информация.
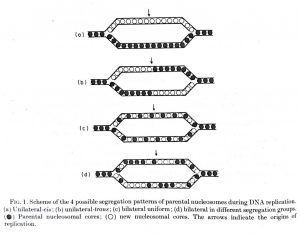
Фиг. 3 Различни възможности за разпределение на нуклеозомите в реплицирания хроматин (според (3,4а)). а) – еднопосочно; b) – транс-еднопосочно; c) – двупосочно равномерно; d) – двупосочно в различни сегрегационни групи. Родителски нуклеозоми – в черно, нови нуклеозоми – в бяло.
Двадесет и повече години по-късно хистоните престанаха да бъдат прости строителни блокове на хроматина, и бе доказано че са важни фактори в активността на гените. Бе намерено, че има епигенетическо маркиране на хистоните, което е различно в различни хроматинови области – подготвени за експресия (еухроматин), потенциално активни области (факултативен еухроматин) или мълчаливи области (хетерохроматин). По хистоновите крайща стават пост-транслационни модификации (ПТМ) (ацетилиране, метилиране, фосфорилиране, юбиквитиниране, и т.н.), които корелират с транскрипционното състояние на гените, опаковани с носещите тези модификации нуклеозомни хистони. Това накара Дейвид Елис да обяви в 2001 (5 – Jenuwein Allis), че има “хистонов” код, който епигенетически анотира активни или репресирани гени. Е, казах си, самите хистони (и техните варианти) не успяха да донесат епигенетичното разнообразие, както беше в началната Цанева идея, но с модификациите тази идея се възражда в нова одежда. Все пак беше редно Д. Елис да спомене в исторически план модела на д-р Цанев. За да опресним паметта на научната общественост по случай 80-годишнината на д-р Цанев публикувахме през 2003 статия (1), в която правехме подобно съпоставяне на хипотезите.
Но погледнато в дъбочина, нещата не се оказаха така прости. Стивън Хеников направо обявяви, че комбинаторния хистонов код не е отговорил на очакванията да бъде “парадигмата за клетъчната (епигенетична) памет” (6 Maher Turner Henikow 2006). За разлика от ДНК-овия код, при който “буквите” имат чисто кодово значение и има нужда от четец, който да интерпетира какво е записано, т.е. каква е семантичната информация, случаят с хистоновия код е друг. Според Хеников хистоновите модификации могат да доведат: 1/ до прост биохимичен ефект от натрупване на модификации по една хистонова опашка, с което се влияе на взамодействията/връзките или 2/ до промени в стабилността на нуклеозомите (водеща до различна отвореност на нуклеозомите към транскрибиращата машинария – например ацетилирането на лизините неутрализира положителните им електрически товари) или 3/ до предоставяне на платформа за свързване с белтъци специфични за различни структури на хроматина (както е при метилирането на лизините, които привличат хетерохроматиновия белтък НР1). Диференциацията на активния хроматин не може да се припише просто на някакъв “хистонов” код. Брайън Търнър също е скептичен, макар да приема, че все пак поне мълчанието на хетерохроматина може да се свърже със специфично метилиране на хистоните. Но дали метилиращите ПТМ имат причинно действие? Те знак за стоп ли са, който действува поради обществено уговаряне, а не защото самият знак има вътрешно спирачно действие. Или просто са стоп-лампичките отзад на колата, които светват при натискане на спирачката, т.е. – само индикатори. Кое е яйцето, кое е кокошката – мълчаливият или говорящият хроматин са такива, защото специфични четци (каквито вече са характеризирани) са видяли ПТМ-ите и съответно са затворили или отворили хорматина, или други фактори вършат това и ПТМ са само следствие от степента на генна активност? По аналогия – по сигнал-предаващите пътища вървят процеси на специфично фосфорилиране/дефосфорилиране, но никой не нарича това “код”.
В цитоплазмата ПТМ са едни, в състава на нуклеозомите в хроматина – други, а и не са много стабилни, което е необходимо за един код, който епигенетично трябва да се предава вертикално на поколенията. Сякаш за да се “спаси положението” Хеников и др. откриха че има специфични хистонови варианти, които са характерни за активни или пасивни области на генома (7, Henikoff Furuyama Ahmad 2004). Особено определящо е участието на вариантите на хистона Н3: вариант Н3.1 – за постоянно мълчаливия конституивен хетерохроматин, вариант Н3.2 – за факултативния хетерохроматин, където активността зависи от метаболитното състояние на клетката и от етапа на развитие на организма, и вариант Н3.3 (четири консервативни аминокиселинни замени спрямо Н3.2) – при еухроматина (който е отворен, и може да „говори”, да е активен).
Като любител на „кодове” Елис не закъсня и предложи «хистон-Н3 баркод» ((8) Hake Allis 2006)
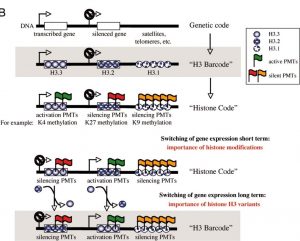
Фиг. 4 Хистонови „бар-кодове“. Заглушени(неактивни) гени и съответните им хистонови варианти и ПТМ (Н3.1, Н3.2, и Н3К27ме3 и Н3К9ме3) и транскрибирани (активни) гени с активиращ Н3.3 хистонов вариант и Н3К4ме3 акивиращ маркер (8).
Според него посочените варианти на Н3 задават сигнатура, която създава хромозомни области с различна структура, които влияят на епигенетичните състояния по време на клетъчната диференциация и развитие. Тази сигнатура – “Н3 бар-код” – гарантира дълговременна клетъчна памет, която може да бъде предавана през много митотични деления. Тези варианти “привличат” специфични ПТМ, които задават хистоновия код и предоставят платформа за други белтъци, които си вадят съответните заключения и превключват в положителна или отрицателна страна генната експерия. Така че хистоновият код работи между клетъчните деления, а H3-6ap-кода пренася носи паметта през деленията. Това предполага, че ПТМ са специфични за различните варианти. Но Алмузни и сътрудници намират (Groth 9, 2007), че това не е така, поне що се отнася до Н3.1. Н3.1 може да носи и активни и репресивни ПТМ в зависимост от близостта си с нуклеозоми носещи Н3.3, така че “Н3-бар код” – не може да се приеме без резерви. Това наподобява ситуацията със стволовите клетки, които, бидейки плурипотентни, носят ПТМ, както за активност, така и за репресивност и са с по-отворен хроматин от диференцираните клетки (Meshorer 2006;(10)). Изглежда някакъв друг програмиращ механизъм кара в даден момент стволовите клетки да се откажат от някои от своите “потентности”.
За разлика от Елис (8), Хеников знае много добре и цитира (7) не само Цанев & Сендов (1971), но и работите на Цанев с Русев, Василев и др. (3,4), както и резултатите на Гренобълската група на Стефан Димитров (по свойствата на макроН2A, специфичен за мълчаливия хроматин). Сравнението на Н3.2 и Н3.3 е нагледен пример за това какво има пред вид Търнър, когато казва, че тези варианти (подобно на ПТМ) не съставят код подобен на ДНКовия. Присъствието на цистеин на 96то място в Н3.2 може да доведе до дисулфидни мостове, които да компактизират нуклеозомите и в крайна сметка да накарат хроматина да онемее в хетерохроматинова форма. Такъв код носи сам в себе си семантиката, няма нужда от допълнителен четец-дешифровач. Присъствието на Н3.3 не се отразява на нуклеозомната структура, но на над-нулеозомната. Там където има Н3.3 липсва хистона Н1, който би помогнал за компактизиране на хроматина и междунуклеозомните контакти довеждат до по-достъпна за транскрипция структура. Докато Н3.1 и Н3.2 се разполагат върху ДНК само при репликация, вариантите Н3.3 носещи информация за “активност” се обменят с хистоните Н3 и в интерфазата. С това една замяна на Н3 с вариант Н3.3 прави съответния хроматинов участък потенциално активен (8). Тази активност е следствие от над-нуклеозомната структура. Този механизъм показва, че има възможност за хоризонтален пренос на епигенетична информация и даже ако хистоновите олигомери се изграждат само от стари или само от новодошли хистони това няма да е пречка за предаване на епигенетичната информация в интерфаза и от там през поредната митоза.
Независимо как става епигенетичното маркиране на хроматина от основна важност е как едно състояние на активност или репресираност (което не е само по себе си “записано” в ДНКовия код) може да преживее митотични деления. Това е трудно да стане, ако приемем споменатия в началото модел на репликация (3,4а, б Поспелов, Русев 1982), при който не става размесване на хистоните от родителските нуклеозоми с новодошли хистони. Как идват новите хистони върху ДНК за да възстановят нуклеозомната плътност след репликационната вилица? И как върху съответната ДНК “кацват” специфичните хистонови варианти? Алмузни и сътрудници установиха през 2004, че депозирането на нови хистони може да става не само с готови цитоплазмени Н3.Н4-тетрамери (както се смяташе дотогава), а и с Н3.Н4-димери (вж. Обзора на Алмузни и Седар (11)). В този обзор се цитира работата на Йорданка Златанова (потомка на ИМБ) и сътр. (12), в която се дава класификация на възможните хистонови олигомери.
Този на пръв поглед неособен резултат е извънредно обнадеждаващ. Ако тези димери преставляват стабилно състояние, то може да си представим, че старите “родителски” Н3.Н4-димери могат да останат върху раздвояващите се вериги и така да запазят кода (било то “Н3 бар”-кода, или хистоновия ПТМ код по хистоновите опашки) и да го продиктуват на новоидващия “дъщерен” Н3.Н4-димер. Алмузни и съавтори намериха също, че различните варианти има различни превождачи-шаперони, които ги доставят на новосинтезиращите се ДНК вериги. По същество това бе резултат възраждащ идеята на д-р Цанев за необходимостта от полуконсервативна сегрегация на хистоните с цел лесно унаследяване на епигенетичната информация при клетъчно деление. Възможно е такъв да е механизмът само в част от хроматина, напр. еухроматина, а в останалата хетерохроматинова част Н3.Н4 да се предават под формата на цели тетрамери. Така ще могат да се избегнат противоречията в експериментални данни. Новите данни, обаче, не потвърждават да има широко разпространено разцепване на Н3Н4 октамера на димери при репликация.
В последните години започна прилагане на нови методи за изследване на специфични учатъци от хроматина веднага след репликация – дали се възстановява разположението на нуклеозомите и композицията им (варианти и ПТМ). Резултатите на Грот и сътр. (13,14) показват, че след репликация бързо се възстановява структура на активния хроматин и постепенно до края на S-фазата и на хетерохроматина. Точността на метода дава възможност да се твърди че позициите на нуклеозомите са запазени в рамките на +/- 200 нуклеотиди. Първоначално зоните без нуклеозоми (близо до стартовете на транскрипция) в реплициращия се активен хроматин за запълнени, но след кратко веме се освобождават. Според Райнберг и сътр. (15,16) се възстановява само хетерохроматина с позиционирани нуклеозоми и специфифични ПТМ, но не и нуклеозомните позиции в активния хроматин. Това се установява с използуване на CRISPR метода за “прицелване” върху конкретно място в хроматина. E. coli BirA биотин лигаза, съчленена с dСаs9 ензима “се завежда” с водеща РНК (gRNA) до нуклеозома въху конкретна ДНК последователност (вж. фиг. 5). dСаs9 трябва да разплете около 20 нуклеотидни двойки ДНК около нуклеозомата и с водещата РНК да провери дали е “кацнала” на правилната ДНК последователност. Ако това е така, ензимът може да използува BirА oпашката си. Хистоните Н3 са модифицирани с биотин-акцепторен пептид, който BirA лигазата биотинилира само върху хистона H3 в конкретната нуклеозома. След репликация може да се следи как тази нуклеозома е разположена по ДНК. В репресирани хроматинови участъци позициите се запазват, докато в активирани участък нуклеозомата се премества от оригиналната си позиция. Това кара Райнберг да обяви (15), че само неактивното състояние на хетерохроматина се предава епигенетично чрез родителските хистони, докато за еухроматина има нужда от допълнителни фактори.
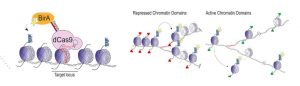
Фиг. 5 Специфично белязане на конкретна нуклеозома и проследяването й заедно с ПТМ маркерите в репресирано(червени кръгчета) или активно (зелени кръгчета) хроматиново състояние след репликация (според (16)).
Въпросът няма еднозначно решение. Има гени при които активното състояние (наличие на триметилирания Н3К4м3) помага на транскрипцията, при други е следствие от нея. Тези резултати са обсъдени по отношение на активния маркер Н3К4ме3 в обзора на Howe и сътр. (17). Там се цитира работата на друга питомница на д-р Цанев – Зоя Аврамова и сътр (18a, и обзора 18б). При суша растенията Arabidopsis увеличават транскрипцията на гени отговарящи на стреса. Памет за тази тяхна натренираност е нетипично високото ниво на Н3К4ме3 в областта на тези гени в периоди с нормална хидратация. Така за първи път при растения Аврамова и сътр. показват как епигенетично се запазва своего рода транскрипционна памет, която да се използува при бъдещо засушаване.
Пример за това как триметилиране на Н3K4 в нуклеозомата на конкретен ген води до активиране на транскрипцията е работата на Кано-Родригец и сътр. (19). Пак с помощта на елегантния CRISPR метод с водеща РНК се насочва dCas9 ензимът към конкретна ДНК позиция (вж. фиг. 6). Този ензим е свързан ковалентно с Н3К4 метилтрансфераза и това в крайна сметка довежда до активиране на заглушен прицелен (конкретен) ген.
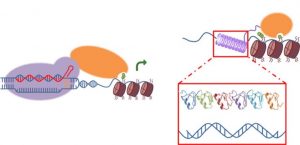
Фиг .6 Насочена епигенетична редакция –триметилиране на Н3К4 върху конкретно място в генома. Оранжева елипса – метилтрансфераза, синя елипса – dCas9 с водеща РНК (червено).( Схема по (19)).
Грот и сътр. (20) обобщават съвременните познания по епигенетиката на реплициращия се хроматин (Фиг. 7). В новосинтезираната ДНК в (репресирания) хетерохроматин родителските нуклеозоми се разполагат с техните ПТМ епигенетични маркери на оригиналните им места и новопостъпващите нуклеозоми възпроизвеждат тези маркери (H3K27me3) с помощта на четящи и записващи ензимни и други активности (PCR2, SUZ12, EED, EZH2) (Фиг. 7b) . В активният хроматин наред с епигенетичното маркираните Н3К4ме3 и Н3К36ме3 има характерни участъци свързани с енхансерни и промоторни белтъци и РНК полимераза (Фиг. 7а). Веднага след репликацията родителските и новооформените нуклеозоми са навсякъде (Фиг. 7а). Много скоро важните контролни ДНК участъци са освободени от нуклеозоми и свързват регулаторните белтъчни фактори нужни за транскрипционното активиране (Фиг. 7с). Новопостъпилите октамери получават постепено епигенетичните ПТМ маркери съответни на родителските и така еухроматиновото състояние е установено (Фиг.7с). За това вероятно помагат транскрипционните фактори свързващи се в регулаторни ДНК участъци и започналата транскрипция (наличност на РНК полимераза).
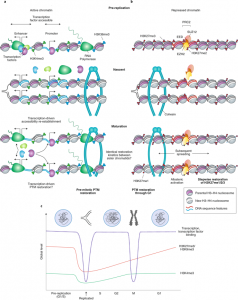
Фиг. 7 Схема на реплициращия се хроматин и възстановяването на активното и репресираното състояние по Грот и сътр., Nature Cell Biology (20).
В заключение съпоставката на разработките на д-р Цанев и сътр. преди 30-тина години (миналото хилядолетие!!!) със сегашното развитие на епигенетиката, в което някои от питомниците му участвуваха през годините, показва, че той не само е основател на молекулната биология в България, не само е нейният първи поет, но е и нейният първи епигенетик на световно ниво, който е имал правилно прозрение за това какви епигенетични подходи използува Природата. Мир на праха му и поклон пред паметта на този достоен български учен, под чието ръководство сме имали честта да работим. След промените 1989 г. той оневини заминаващите на Запад сътрудници. Каза, че вместо да консервираме мозъци можем да ги разпратим да се осъществяват където могат. И вече десетки години образовани в България молекулярни биолози дават своя принос в световната наука. Един най-пресен пример е д-р Пламен Георгиев (Макс Планк И-тут Фрайбург), възпитаник на Софийския Университет, който е съавтор на статия (21), показваща за първи път онаследяване (оцеляване) на епигенетически маркер H4K16ac след мейоза. Поредно доказателство на идеите на д-р Цанев за епигенетичния код.
Цитирана литература
- Staynov DZ, Tsaneva IR, Chipev CC, Schaffner W (2003) “Roumen Tsanev, Pioneer of the Early Days of nucleic Acid Gel Electrophoresis and Histone Code epigenetics”, Biol Chem 384: 329.
- Tsanev R, Sendov B (1971) “Possible Molecular Mechanism for cell differentiation in multicellular Organisms”, J Theor Biol 30:337.
- Pospelov V, Russev G, Vassilev L, Tsanev R (1982) “Nucleosome segregation in Chromatin replicated in the Presence of Cycloheximide”, J Mol Biol 156: 79.
4a. Russev G, Tsanev R (1979) “Nonrandom segregation of histones during chromatin replication”, Eur J Biochem 93: 123.
4б. Russev G, Hancock R (1982) “Assembly of new histones into nucleosomes and their distribution in replicationg chromatin”, Proc Natl Acad Sci USA 79: 3143.
- 5. Jenuwein T, Allis CD (2001) “Translating the Histone Code”, Science 293:
- Maher B, Turner BM, Henikoff S (2006) в “The Nucleosome Untangled”, The Scientist 20: 35.
- Henikoff S, Furuyama T, Ahmad K (2004) „Histone variants, nucleosome assembly and epigenetic inheritance”, Trends in Genetics 20:320.
- Hake SB, Allis CD (2006) “Histone H3 variants and their potential role in indexing mammalian genomes: The “H3 barcode hypothesis”, Proc Natl Acad Sci (USA) 103:6428.
- Groth A, Rocha W, Verreault A, Almouzni G (2007) “Chromatin Challenges during DNA Replication and Repair”, Cell 128:721.
- Meshorer E, Misteli T (2006) “Chromatin in pluripotentembryonic stem cells and differentiation” Nature Rev Mol Biol 7:540.
- Almouzni G, Cedar H. „Maintenance of Epigenetic Information“ Cold Spring Harb Perspect Biol. 2016;8(5):a019372.
- Jordanka Zlatanova, Thomas C Bishop, Jean-Marc Victor, Vaughn Jackson, Ken van Holde ” The Nucleosome Family: Dynamic and Growing“ (2009) Structure. 17(2):160-71.
- Nazaret Reverón-Gómez , Cristina González-Aguilera , Kathleen R Stewart-Morgan , Nataliya Petryk , Valentin Flury , Simona Graziano , Jens Vilstrup Johansen , Janus Schou Jakobsen , Constance Alabert , Anja Groth (2018) „Molecular Accurate Recycling of Parental Histones Reproduces the Histone Modification Landscape During DNA Replication“. Cell 72, 239–249.
- Kathleen R. Stewart-Morgan,Nazaret Reveron-Gomez, Anja Groth (2019) „Transcription Restart Establishes Chromatin Accessibility after DNA Replication“ Molecular Cell 75, 284–297.
- Reinberg, D., and Vales, L.D. (2018).”Chromatin domains rich in inheritance. Inheritance of repressive histone PTMs.” Science Vol. 361, 33-34.
- Thelma M. Escobar, Ozgur Oksuz, Ricardo Saldan˜ a-Meyer,Nicolas Descostes, Roberto Bonasio,Danny Reinberg (2019) „Active and Repressed Chromatin Domains Exhibit Distinct Nucleosome Segregation during DNA Replication“. Cell 179, 953–963.
- Francoise S. Howe, Harry Fischl, Struan C. Murray and Jane Mellor (2016) „Is H3K4me3 instructive for transcription activation?“ Bioessays 39, 1, 1600095, 1-12.
18а. Ding Y, Fromm M, Avramova Z. (2012). „Multiple exposures to drought “train” transcriptional responses in Arabidopsis“. Nat Commun 3: 740, 1-9.
18б. Michael Fromm М., Avramova Z. (2014) ATX1/AtCOMPASS and the H3K4me3 marks: how do they activate Arabidopsis genes? Current Opinion in Plant Biology 21:75–82.
- 19. David Cano-Rodriguez, Rutger A.F. Gjaltema, Laura J. Jilderda Pytrick Jellema, Jelleke Dokter-Fokkens,Marcel H.J. Ruiters & Marianne G. Rots (2016) ”Writing of H3K4Me3 overcomes epigenetic silencing in a sustained but context-dependent manner“. Commun. 7,12284 1-11.
- 20. Kathleen R. Stewart-Morgan, Nataliya Petryk and Anja Groth (2020) „Chromatin replication and epigenetic cell memory“. Nature Cell Biology VOL 22 361–371.
- Maria Samata, Anastasios Alexiadis, Gautier Richard, Plamen Georgiev, Johannes Nuebler, Tanvi Kulkarni, Gina Renschler, M. Felicia Basilicata, Fides Lea Zenk, Maria Shvedunova, Giuseppe Semplicio, Leonid Mirny, Nicola Iovino, Asifa Akhtar(2020) Intergenerationally Maintained Histone H4 Lysine 16 Acetylation Is Instructive for Future Gene Activation. 2020 Cell 182, 127-144
Автор: д-р Константин Чипев